Лекция 8.
Мембранные потенциалы и их ионная природа. Потенциал покоя. Уравнение Нернста. Уравнение Гольдмана-Ходжкина-Катца.
Механизм генерации потенциала действия. Распространение потенциала действия по миелиновым и безмиелиновым нервным волокнам.
11.7. Равновесный и стационарный мембранные потенциалы. Потенциал покоя
Опыты Л. Гальвани и А. Вольта во второй половине XVIII в. привели к пониманию того, что функционирование живых тканей сопровождается электрическими явлениями. В настоящее время неоспоримым является тот факт, что генерация и распространение электрических потенциалов — это важнейшее физическое явление в живых клетках и тканях.
Биопотенциалом называют разность электрических потенциалов, образующуюся между двумя точками клеток, тканей и органов в процессе их жизнедеятельности. Биопотенциалы отражают функциональное состояние клеток и тканей. Поэтому их регистрация и анализ являются важным приемом при физиологических исследованиях и в диагностике.

Для понимания природы мембранных потенциалов — электрических потенциалов, образующихся между внутренней и внешней сторонами мембраны, рассмотрим сначала модельную систему,представляющую собой сосуд, разделенный полупроницаемой мембраной (рис. 11.15). Предположим, в левой части сосуда содержатся ионы калия, хлора и какие-либо крупные частицы, например молекулы белка, несущие положительный заряд (раствор 1). В правой части сосуда находятся только калий и хлор (раствор 2). Мембрана способна легко пропускать неорганические анионы и катионы, но является непроницаемой для молекул белка. Цифрами указаны относительные концентрации соответствующих ионов, при которых разность потенциалов составит около 10 мВ.
Общее число частиц в растворах одинаково (сохраняется их электронейтральность), однако концентрация ионов калия во втором растворе больше (см. рис. 11.15, а). Ионы калия устремятся из раствора 2 в раствор 1, а вслед за ними пойдут и ионы хлора (для сохранения электронейтральности растворов). При этом концентрация ионов хлора в первом растворе еще больше возрастет. Этот процесс будет продолжаться до установления равновесного состояния (так называемого равновесия Доннана). Между двумя сторонами мембраны образуется разность потенциалов, которая уравновешивает концентрационный градиент ионов, способных к диффузии (на рис. 11.15, б потоки соответствующих ионов указаны штриховыми стрелками). Мембранная разность потенциалов рассчитывается по формуле Нернста:

(11.35)
Здесь с1 и с2 — молярные концентрации ионов по обе стороны мембраны, R — универсальная газовая постоянная, Т — термодинамическая температура, при которой происходит диффузия, F — постоянная Фарадея, Z — заряд иона. Эту разность потенциалов называют равновесным мембранным потенциалом. Мембранная теория происхождения биопотенциалов была выдвинута в 1902 г. Б. Бернштейном. Действительно, в живой клетке концентрация ионов калия значительно больше, чем в межклеточной жидкости, и крупные органические молекулы практически не проникают через мембрану. Важным доводом в пользу представлений Бернштейна послужил тот факт, что рассчитанная по формуле Нернста разность потенциалов между наружной и внутренней сторонами мембраны мышечного волокна оказалась близкой к измеренной в опытах с помощью внутриклеточного микроэлектрода.
Однако «калиевая теория» мембранного потенциала оказалась несовершенной, не способной объяснить наблюдаемые впоследствии факты отклонения истинных значений потенциалов на мембранах живых клеток от теоретически рассчитанных. Оказалось, что равновесный мембранный потенциал характерен лишь для мертвых клеток, либо клеток с ослабленным метаболизмом.
В настоящее время общепризнанной теорией, объясняющей возникновение и поддержание потенциала на клеточной мембране в состоянии физиологического покоя, является теория А. Ходжкина. Она была развита и экспериментально обоснована им в 50-х гг.XXв. Сущность ее заключается в том, что потенциал, существующий на мембранах невозбужденных клеток (потенциал покоя), обусловлен полупроницаемыми свойствами клеточной мембраны и неравномерным распределением ионов между клеткой и окружающей средой. Это распределение поддерживается механизмами активного переноса, локализованными в самой мембране.
При получении выражения для потенциала покоя важно учитывать знаки ионов, проникающих через мембрану. Это можно сделать, в частности, обозначая знаком плюс плотности потоков положительных ионов и знаком минус — отрицательных. Основной вклад в создание и поддержание потенциала покоя вносятионы натрия, калия и хлора. Суммарная плотность потока этих ионов с учетом их знаков равна

(11.36)
Для живой клетки характерно не равновесное распределение веществ, но существование потоков ионов в обе стороны через мембрану. Такое состояние, при котором число различных ионов, проходящих в единицу времени через мембрану внутрь клетки, равно числу выходящих из клетки ионов, называют стационарным. Ясно, что в стационарном состоянии суммарная плотность потока ионов через мембрану равна нулю: J = 0.
Для плотности потоков положительных ионов натрия и калия и отрицательных ионов хлора запишем общее выражение на основании (11.33) и (11.34)

(11.37)

Здесь квадратными скобками [ ]i, и [ ]0 обозначены концентрации ионов соответственно внутри и вне клетки. Сократив (11.37) на , раскрыв выражения и перегруппировав их, получаем

Логарифмируя это выражение, находим

(11.38)
Если от безразмерного потенциала вернуться к электрическому потенциалу [см. (11.29)], то из (11.38) получаем

(11.39)
— уравнение Гольд мана — Ходжкина — Катца.
Различные концентрации ионов внутри и вне клетки созданы ионными насосами — системами активного транспорта. Можносказать, что потенциал покоя обязан активному переносу.
Для большей наглядности рассмотрим схематично ионные потоки, существующие в состоянии покоя на мембране аксона кальмара (рис. 11.16). На рисунке жирными стрелками указаны потоки ионов, осуществляемые за счет активного транспорта. Пунктиром обозначены стрелки, соответствующие диффузионным потокам засчет градиентов концентрации соответствующих ионов. Обозначены также концентрации ионов натрия, калия и хлора в цитоплазме и окружающей среде.

Известно, что проницаемость мембраны для ионов калия самая высокая. В состоянии покоя соотношение коэффициентов проницаемости для разных ионов равно:

Вследствие этого диффузия калия и хлора идет в обе стороны. Натрий идет через мембрану за счет простой диффузии лишь в одну сторону — снаружи вовнутрь. Однако Ма + -К + -АТФаза интенсивно выводит ионы натрия из клетки, а калия — в клетку. Потенциал покоя, рассчитанный по формуле Гольдмана—Ходжкина— Катца, составляет 60 мВ со знаком минус со стороны внутриклеточного пространства.
На основании большого экспериментального материала было установлено, что величина потенциала покоя может существенно различаться для разных клеток. В таблице 19 приведены данные для различных тканей.
Таблица 19. Потенциал покоя клеточных мембран для различных тканей
Потенциал покоя, мВ
Поперечно-полосатое мышечное волокно лягушки
Сердечное мышечное волокно лягушки
Сердечное волокно собаки
66. Мембранные потенциалы и их ионная природа. Потенциал покоя.
Мембранная теория биопотенциалов была выдвинута еще в 1902 году Бернштейном. Но только в 50-х годах эта теория была по-настоящему развита и экспериментально обоснована Ходжкиным, которому принадлежат основные идеи и теории о роли ионных градиентов в возникновении биопотенциалов и о механизме распределения ионов между клеткой и средой.
Сущность этой теории заключается в том, что потенциал покоя и потенциал действия являются по своей природе мембранными потенциалами, обусловленными полупроницаемыми свойствами клеточной мембраны и неравномерным распределением ионов между клеткой и средой, которое поддерживается механизмами активного переноса, локализованными в самой мембране.
Между внутренней и наружной поверхностями клеточной мембраны всегда существует разность электрических потенциалов. Эта разность потенциалов, измеренная в состоянии физиологического покоя клетки, называется потенциалом покоя.
Причиной возникновения потенциалов клеток как в покое, так и при возбуждении является неравномерное распределение ионов калия и натрия между содержимым клеток и окружающей средой. Концентрация ионов калия внутри клеток в 20 — 40 раз превышает их содержание в окружающей клетку жидкости. Напротив, концентрация натрия в межклеточной жидкости в 10 — 20 раз выше, чем внутри клеток. Такое неравномерное распределение ионов обусловлено активным переносом ионов — работой натрий-калиевого насоса.
Как было установлено, возникновение потенциала покоя обусловлено, в основном, наличием концентрационного градиента ионов калия и неодинаковой проницаемостью клеточных мембран для различных ионов.
Согласно теории Ходжкина, Хаксли, Катца, клеточная мембрана в состоянии покоя проницаема, в основном, только для ионов калия. Ионы калия диффундируют по концентрационному градиенту через клеточную мембрану в окружающую жидкость; анионы не могут проникать через мембрану и остаются на ее внутренней стороне. Так как ионы калия имеют положительный заряд, а анионы, остающиеся на внутренней поверхности мембраны, — отрицательный, то внешняя поверхность мембраны при этом заряжается положительно, а внутренняя — отрицательно.

Понятно, что диффузия продолжается только до того момента, пока не установится равновесие между силами, возникающего электрического поля и силами диффузии.
Если принять, что потенциал покоя определяется диффузией только ионов калия из цитоплазмы наружу, то его величина E может быть найдена из уравнения Нернста:

, где [K]i и [K]e — активность ионов калия внутри и снаружи клетки; F — число Фародея;T — абсолютная температура; E — изменение потенциала; R — газовая константа.
Для количественного описания потенциала в условиях проницаемости мембраны для нескольких ионов Ходжкин и Катц использовали представление о том, что потенциал покоя на равновесный, а стационарный по своей природе, то есть он отражает состояние системы, когда через мембрану непрерывно идут встречные потоки ионов K + , Na + , Cl — и других. Суммарный поток положительно заряженных частиц через мембраны равен сумме потоков одновалентных катионов минус сумма потоков одновалентных анионов. Основной вклад в суммарный поток зарядов практически во всех клетках вносят ионы Na + , K + и Cl — , поэтому
Мембранные потенциалы клетки
Для покоящейся живой клетки эта разность потенциалов называется потенциалом покоя клетки. Потенциал внутри клетки относительно межклеточной жидкости составляет в покое от -60 мВ до -100 мВ, в зависимости от вида клетки.
В процессе деятельности клетки мембранный потенциал может изменяться, и эти изменения в нервных и рецепторных клетках непосредственно связаны с переработкой и передачей информации, а в мышечных волокнах — с их сокращением.
Равновесные потенциалы Нернста
Предположим для простоты, что мембрана в покое проницаема только для одного вида ионов, и найдем равновесный мембранный потенциал, возникающий вследствие диффузии этих ионов через мембрану, учитывая, что равновесное состояние достигается при равенстве электрохимических потенциалов по обе стороны мембраны рг= хе.
Внутри клетки электрохимический потенциал


Так как с обеих сторон мембраны ионы находятся в одном растворителе — воде, то p0i = р0е и условие термодинамического равновесия принимает вид


или
Из последнего соотношения получаем уравнение Нернста для равновесного мембранного потенциала:

Из него следует, что величина равновесного потенциала для любого иона пропорциональна температуре Т клетки и логарифму отношения концентраций этого иона внутри и вне клетки. Потенциал среды, окружающей клетку, обычно принимают равным нулю (т.е. ср^ = 0), поэтому мембранный потенциал представляет собой потенциал внутри клетки по отношению к межклеточной жидкости. Например, для большинства клеток в нормальных условиях концентрация ионов калия внутри значительно выше, чем вне ее, вследствие чего потенциал Нернста по калию отрицательный. Для Na + и СГ, наоборот, концентрация вне клетки значительно выше, чем внутри, поэтому равновесный потенциал Нернста по натрию положительный, а по хлору — отрицательный (из-за отрицательного заряда этого иона, см. табл. 11.1).
Межклеточная жидкость, мМ/л
Обратимые потенциалы металлов, уравнение Нернста.
Исходя из предположения, что, если при взаимодействии металла с водным раствором электролита фазовую границу пересекают только ионы металла, то протекают два сопряженных процесса (А. Н. Фрумкин):
1) анодный (окислительный) процесс – переход ионов металла в раствор с образованием гидратированных ионов:
Ме + Н2О = Ме n+ ·mH2O + ne, (4.5) скорость которого, измеряемая числом ионов, переходящих из твердой фазы в жидкую фазу в единицу времени, может быть выражена через плотность соответствующего тока прямого процесса (рис. 4.4, а);
2) катодный (восстановительный) процесс – разряд гидратированных ионов из раствора с выделением их на поверхности металла в виде нейтральных атомов:
Ме n+ ·mH2O + ne = Ме + Н2О, (4.6) скорость обратного процесса определяется соответствующей плотностью тока (катодный процесс практически используется для электрохимического осаждения гальванических покрытий).
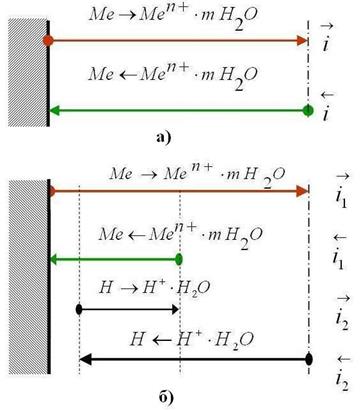
Рис. 4.4. Схема установления электродных потенциалов металлов:
а) – обратимого (равновесного), б) – необратимого.
Какой из этих процессов преобладает, определяется уровнем потенциальной энергии катионов в узлах кристаллической решетки металла ПMe и в растворе Пp. Если ПMe>Пр, то > , то преобладает анодный процесс, суммарная скорость которого равна ia = > . Если Пр > ПМе, то > , то преобладает катодный процесс разряд ионов металла из раствора, суммарная скорость которого равна iк = — .
Образующийся ДЭС затрудняет протекание прямого процесса и облегчает протекание обратного. Когда потенциал в нем достигает значения, при котором энергетический уровень ионов в металле и растворе становится одинаковым, ПМе = Пр, устанавливается динамическое равновесие, при котором скорости анодного и катодного процессов равны:
= = i0, (4.7) где i0 – плотность тока обмена, обусловленная постоянно протекающим обменом ионами между металлом и раствором. (В водных растворах плотность тока обмена твердых металлов составляет 10 -8 — 10 -5 А/см 2 ).
Этому равновесному состоянию соответствует некоторый скачок потенциала металла между металлом и раствором электролита, абсолютная величина которого неизвестна, поскольку разность потенциалов между двумя фазами нельзя измерить непосредственно. Для её определения измеряется э.д.с. элемента, составленного из исследуемого электрода (металла в электролите) и электрода сравнения. Эта э.д.с. и называется электродным потенциалом металла.
Обратимый (равновесный) электродный потенциал металла (ЕMe)o6p или ( ) устанавливается, если в процессе обмена, определяющего потенциал металла в электролите, участвуют только ионы данного металла, т. е. когда металл находится в равновесии с собственными ионами в электролите (рис. 4.4, а).
В случае установления обратимого потенциала скорости анодного и катодного процессов равны ( ), как и соответствующие заряды (количество электричества) процессов, и потерь массы металла нет (ΔmМе=0), т. е. коррозии (растворения) металла не происходит.
Обратимый (равновесный) электродный потенциал металла рассчитывается по уравнению Нернста, его величина количественно характеризует способность металла посылать свои ионы в раствор электролита.
Уравнение Нернста может получено на основе термодинамических соотношений. Т.к. знак потенциала зависит от направления реакции, обратимо протекающие реакции записываются в восстановительной форме:
Для этой реакции уравнение изотермы Вант-Гофффа записывается как:
, (4.9) где – стандартное изменение энергии Гиббса; R = 8,314 Дж/моль . К – универсальная газовая постоянная; T – температура, К; aMe , – активности металла и ионов металла в растворе.
Поскольку, работа по созданию двойного электрического слоя (аналогично соотношению 4.2) равна убыли энергии Гиббса:
де Eдс – потенциал двойного электрического слоя (потенциал гальванического элемента металл-раствор или обратимый потенциал металла Еобр); n – заряд иона металла; F – постоянная Фарадея.
Подставляя (4.9) в уравнение 4.9, поскольку aMe =1, =1, получаем уравнение Нернста:
где – стандартный обратимый потенциал металла (потенциал при Р=1атм =1,013·10 5 Па, = 1 моль/кг).
В общем случае, при протекании на поверхности металла, находящегося в контакте с электролитом, окислительно–восстановительной реакции с участием окисленной Ох и восстановленной Red форм вещества:
mOx + ke nRed, (4.12)
обратимый потенциал этой (катодной) реакции равен:
где — стандартный окислительно-восстановительный потенциал реакции (обратимый или равновесный потенциал при ), и — активности окислителя и восстановителя с соответствующими стехиометрическими коэффициентами.
Стандартные потенциалы приведены в таблице 4.1.
Стандартные электродные потенциалы некоторых металлов и
окислительно-восстановительных реакций при 25 0 С.
| Реакция | Потенциал, В | Реакция | Потенциал, В |
| Li + +e=Li | –3,01 | H + + e = ½H2 | 0,000 |
| K + +e=K | –2,925 | Sn 4+ +4e=Sn | 0,007 |
| Na 2+ +2e=Na | –2,900 | Cu 2+ +2e=Cu | 0,337 |
| Mg 2+ +2e=Mg | –2,370 | Cu + +e=Cu | 0,521 |
| Al 3+ +3e=Al | –1,660 | Fe 3+ +e=Fe 2+ | 0,77 |
| Ti 2+ +2e=Ti | –1,630 | Ag + +e=Ag | 0,799 |
| Ti 3+ +3e=Ti | –1,210 | Hg 2+ +2e=Hg | 0,854 |
| Mn 2+ +2e=Mn | –1,180 | Pd 2+ +2e=Pd | 0,987 |
| Cr 2+ +2e=Cr | –0,913 | Ir 3+ +3e=Ir | 1,150 |
| Zn 2+ +2e=Zn | –0,762 | Pt 2+ +2e=Pt | 1,190 |
| Cr 3+ +3e=Cr | –0,740 | Au 3+ +3e=Au | 1,500 |
| Fe 2+ +2e=Fe | –0,440 | Au + +e=Au | 1,690 |
| Cd 2+ +2e=Cd | –0,402 | 2H2O+2e=H2+OH – (щелочные среды) | –0,828 |
| Mn 3+ +3e=Mn | –0,283 | O2+2H2O+4e=4OH – (нейтральные и щелочные среды) | 0,401 |
| Ni 2+ +2e=Ni | –0,250 | +H2O+2e=ClO – +2OH – (щелочные среды) | 0,66 |
| Mo 3+ +3e=Mo | –0,200 | NO +4H + +3e=NO+2H2O | 0,96 |
| Sn 2+ +2e=Sn | –0,136 | O2+4H + +4e=2H2O (кислоты) | 1,23 |
| Pb 2+ +2e=Pb | –0,126 | Cl2+2e=2Cl – | 1,36 |
| Fe 3+ +3e=Fe | –0,037 | H2O2+2H + +2e=2H2O | 1,78 |
Активность ионов в реакции диссоциации:
определяется как произведение концентрации данного иона на средний коэффициент активности:
где С+, С– – моляльные концентрации соответствующих ионов в растворе, m и n – число катионов и анионов, на которые распадается молекула при диссоциации, f± — средний ионный коэффициент активности.
Для труднорастворимых веществ, например гидрооксидов металлов:
активность ионов металла:
Пример 4.1. Рассчитать обратимый потенциал меди в 0,1 моляльном водном растворе СuSO4 при 298 К (средний ионный коэффициент активности ионов меди в данных условиях, =0,15, берется по справочным данным).
Решение. 1) Окислительно-восстановительная электродная реакция меди: Сu 2+ + 2е Сu.
2) Обратимый потенциал меди находим по уравнению Hepнcтa: .
3) Активность ионов меди: = с n = =0,1 1 0,15 = 0,015, где: с – концентрация, n – количество ионов, переходящих в раствор. Активность твердых веществ всегда принимается равной единице: =1.
4) Стандартный обратимый потенциал для реакции берем из справочных данных (табл.4.1). Подставляем полученные данные и определяем: В.
Пример 4.2. Найти обратимый потенциал кислородного электрода в нейтральном 1 m растворе Na2SO4 при 298 К в атмосфере воздуха.
Решение. 1) Кислород восстанавливается в катодном процессе по реакции: 2Н2О+О2+4е=4ОН , обратимый потенциал которой по уравнению Нернста, с учетом данных по стандартному потенциалу реакции (табл.4.1) .
2) Активность газа определяется его парциальным давлением. Парциальное давление кислорода в воздухе = 0,21 атм.
3) Активность гидрооксил-ионов в нейтральном растворе определяется через ионное произведение воды, КВ= = 1,01 . 10 -14 (для 298 К, значение берется по справочным данным). Отсюда , поскольку рН=-lg , и для нейтрального раствора равен 7.
4) Подставляем полученные значения в уравнение Нернста: В.
Дата добавления: 2017-02-13 ; просмотров: 4864 ;